Command Palette
Search for a command to run...
ريادة في القطاع! NVIDIA تتعاون مع فريق ديفيد بيكر الحائز على جائزة نوبل لإطلاق RFD4-Proteina، لمعالجة تحديات فصل التسلسل والبنية والوظيفة
في السنوات الأخيرة، أدت التمكينات التقنية للذكاء الاصطناعي إلى تغيير جذري في مجال هندسة البروتينات، مما فتح آفاقاً واعدة في مجالات متعددة مثل الأدوية الحيوية، وتطوير اللقاحات، والعلاج الجيني، والتصنيع الحيوي. ومع ذلك، عند العودة إلى تصميم البروتينات الحسابية بحد ذاته، أصبح التحدي الرئيسي للمرحلة التالية هو الانتقال من حل مشكلة "إمكانية التوليد" إلى تحقيق "توليد أفضل". لقد أثبتت الإنجازات السابقة أن تصميم بروتينات ذات قدرة ربط محددة أو نشاط تحفيزي أصبح أمراً ليس بالصعب، إلا أن تحقيق ذلك بشكل مستقر في الآلات الجزيئية المعقدة التي تتطلب تغيرات ديناميكية في البنية الكلية وتفاعلات مقيدة متعددة، لا يزال يمثل تحدياً كبيراً.
بشكل مبسط، تعتمد وظيفة البروتين جوهرياً على التفاعل الجزيئي الدقيق للمجموعات الكيميائية المحددة ضمن شكل ثلاثي الأبعاد محدد وترتيب مكاني دقيق مع جزيئات أخرى. لذلك، يجب في مرحلة تصميم البروتين مراعاة الترابط القوي بين الخصائص الجزيئية (molecular identity)، والتشكل البنيوي (structural conformation)، والهندسة التفاعلية (interaction geometry) في آن واحد. يمكن للأساليب الحالية مثل RFdiffusion3 توليد هياكل كاملة الذرات في بيئات جزيئية متنوعة، لكنها لا تستطيع تصميم تسلسلات عالية الجودة للهياكل المولدة. يمكن لـ Proteina-Complexa توليد تسلسلات وهياكل البروتينات معاً، والاعتماد على البحث الموجه بالمكافآت لتوسيع نطاق البحث، لكن طريقة تمثيله مصممة خصيصاً لتصميم البروتينات، حيث تكون تشكولات الجزيئات الشريكة في التفاعل ثابتة وغير قابلة للتغيير.
لمواجهة هذا التحدي، اقترحت مجموعة بحثية مشتركة من معهد تصميم البروتينات بجامعة واشنطن، وشركة NVIDIA، وغيرها من المؤسسات، نموذج RFD4-Proteina، وهو أول نموذج موحد عالمياً يجمع بين توليد التسلسل والهيكل للمعقدات الجزيئية الحيوية متعددة المكونات، بناءً على الاستدلال في الفضاء الكامن. ينقل هذا النموذج تصميم البروتينات من نموذج التوليد القائم على "أخذ عينات من التوزيع + الفرز اللاحق" إلى نموذج البحث المقيد الذي يتضمن استدلالاً داخلياً/خارجياً، متجاوزاً بذلك اختناقات النماذج التقليدية المتمثلة في ضيق أنواع الجزيئات، وفصل التسلسل عن الهيكل، وفرضية صلابة الشريك، وقد أثبت فعاليته من خلال تجارب معملية واسعة النطاق.
نُشرت النتائج ذات الصلة تحت عنوان "Biomolecular design through latent reasoning with RFD4-Proteina".
أبرز نقاط البحث:
- ابتكار أول فضاء كامن موحد + نموذج استدلال مزدوج، مما يخفف من جذور مشكلة فصل التسلسل-الهيكل-الوظيفة.
- تغطية نموذج واحد لسلسلة كاملة من سير عمل التصميم الجزيئي، مما يمكنه من استبدال عدة أدوات متخصصة.
- تحقيق اختراقات متعددة عبر التحقق المخبري، بما في ذلك أول تصميم من الصفر لنشاط إنزيمي لتحضير مواد دوائية فعالة.
رابط الورقة البحثية:
https://rfd4-proteina.org/assets/paper/RFD4-Proteina.pdf
بناء معايير التدريب والتقييم لبيانات الجزيئات متعددة الوسائط
مجموعة بيانات التدريب
تتكون مجموعة بيانات التدريب لنموذج RFD4‑Proteina من مزيج من مكتبات البنى الحيوية العامة متعددة المصادر، ومجموعات بيانات تركيبية مولدة عبر المحاكاة الفيزيائية، ومجموعات بيانات مقطرة. تم إنجاز جميع عمليات معالجة البيانات ووضع التسميات باستخدام أداة AtomWorks. تُظهر الصورة أدناه نسب أخذ العينات من مجموعات البيانات المختلفة في مراحل التدريب المختلفة:
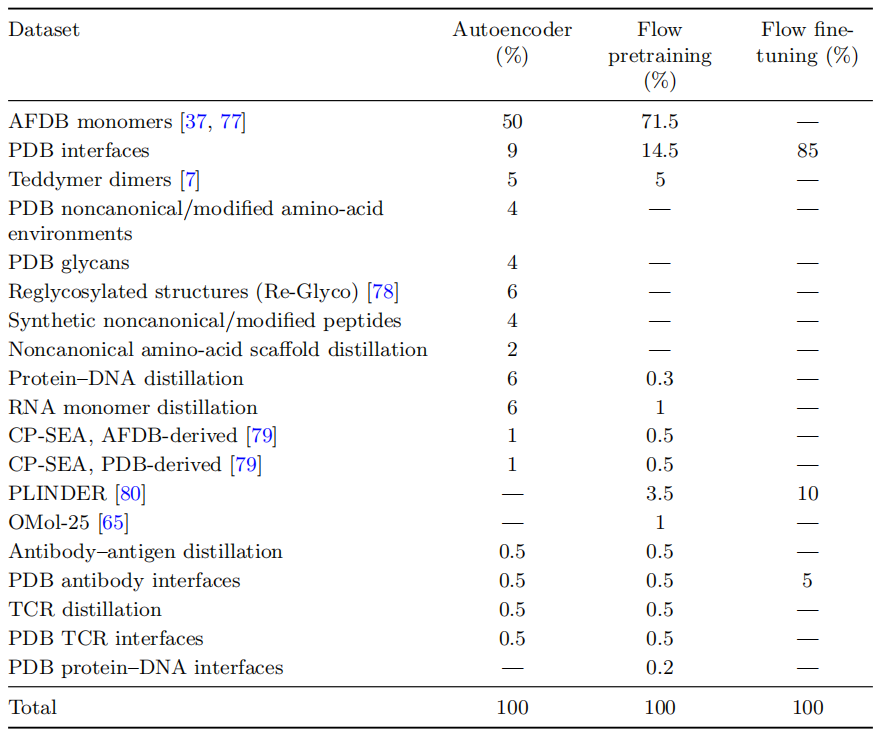
لا تقتصر مجموعة البيانات على البروتينات القياسية فحسب، بل توسعت لتشمل عينات من الجزيئات الصغيرة، والأحماض النووية، والسكريات، والتعديلات ما بعد الترجمة (الأحماض الأمينية غير الكلاسيكية NCAA)، وذلك لسد النقص في عينات أنواع الجزيئات النادرة في الهياكل التجريبية الحقيقية.
أثناء التدريب، يتم أخذ عينات عبر الإنترنت لشروط القيد المختلفة لمحاكاة مهام تصميم البروتينات في العالم الحقيقي، مما يعزز فهم النموذج لأنواع القيود الوظيفية المختلفة.
مجموعة بيانات الاختبار
مجموعة اختبار تعبئة السلاسل الجانبية هي مجموعة بيانات PackBench القياسية، وتحتوي على هياكل أساسية حقيقية لـ 114 بروتيناً طبيعياً من CASP14 وCASP15؛ مجموعة اختبار تصميم التسلسل لهيكل ثابت، وتتضمن هياكل أساسية لبروتينات طبيعية وهياكل أساسية مصممة من الصفر، حيث تمثل الأولى هياكل طبيعية لم تظهر أثناء التدريب وتم حجزها للاختبار، بينما تمثل الثانية هياكل أساسية لبروتينات اصطناعية مولدة بواسطة نموذج RFD3 المستقل؛ مجموعة اختبار الكيمياء الفراغية للربيطات هي قاعدة بيانات CCD، وتحتوي على 43 ربيطة لم تظهر في مجموعة بيانات التدريب؛ مجموعة اختبار مهام تحسين التصميم تتكون من 102 مقترعاً مولداً بواسطة RFdiffusion سابقاً ولم يجتز فحص الهيكل بواسطة AF3؛ مجموعة اختبار ارتباط معقدات الببتيد-MHC، وتتضمن ثلاث ببتيدات مستهدفة: MART-1 (مستضد ورمي)، وببتيد بروتين غشاء SARS-CoV-1، وببتيد Phox2B؛ تحتوي مجموعة اختبار مهام المناطق غير المرتبة جوهرياً (IDRs) على 8 ببتيدات IDR، مقسمة إلى فئتين: 5 منها تشكل هياكل ثانوية بعد الارتباط؛ و3 منها لا تشكل هياكل ثانوية مستقرة بسهولة حتى عند ارتباطها؛ تحتوي مجموعة اختبار مهام كينازات مستقبلات تروبوميوسين (TrkA وTrkB وTrkC) على 94 جيناً مشفراً للتصميم.
فضاء كامن موحد + استدلال مزدوج يبتكران أول نموذج توليد لسلسلة كاملة
الفكرة الأساسية في تصميم نموذج RFD4-Proteina هي إنشاء فضاء كامن موحد كيميائي-تشكيلي، والتوليد عبر مطابقة التدفق (Flow-Matching)، مع إجراء استدلال كامن مزدوج داخلي/خارجي داخل الفضاء الكامن، وتحقيق إعادة بناء ذرية معقولة تحت إشراف قيود حقول القوة الفيزيائية القابلة للاشتقاق.
الفضاء الكامن الموحد الكيميائي - التشكيلي
أولاً، درب الفريق البحثي مشفر-فك تشفير (Autoencoder) لترميز الأحماض الأمينية الطبيعية/المعدلة، والسكريات، والنوكليوتيدات، إلى إحداثيات ذرات مرساة (على سبيل المثال، استخدام ذرة ألفا-كربون للأحماض الأمينية) ومتجه كامن ثلاثي الأبعاد (هوية الجزيء)، كما هو موضح في الصورة أدناه. بالطبع، لا يتم ضغط كل شيء في المتجه الكامن؛ حيث يحتفظ جزء من مكونات الجزيء بمعلومات صريحة عن أنواع الذرات والروابط الكيميائية، مما يضمن عدم حدوث فوضى في الهيكل الكيميائي.
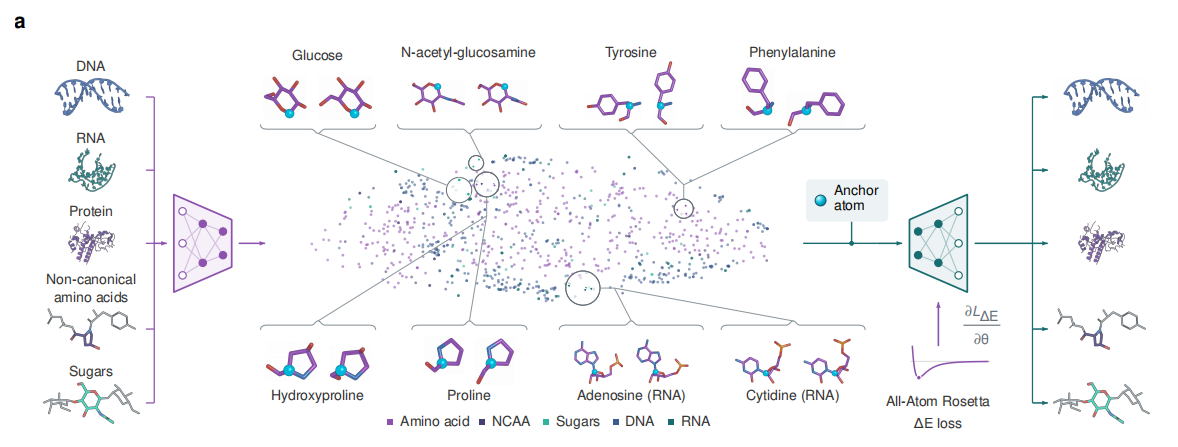
للحصول على هياكل معاد بناؤها منطقية فيزيائيًا، تم تقديم دالة خسارة طاقة قائمة على Rosetta بشكل خاص أثناء عملية الضبط الدقيق، مع حساب التدرجات للإحداثيات المفكوكة باستخدام TMol.
نموذج المطابقة التدفقية (Flow-Matching)
بعد ذلك، قام فريق البحث بتدريب نموذج المطابقة التدفقية (Flow-Matching) لتوليد إحداثيات الجزيئات والمتجهات الكامنة في آنٍ واحد، مما يمثل توسيعًا للإطار المتغير الكامن الجزئي الذي اقترحته La-Proteina / Proteina-Complexa.
مقارنةً بطرق التصميم المشترك للتسلسل-الهيكل السابقة، قام البحث بترقية النموذج من خلال أربعة أبعاد رئيسية:
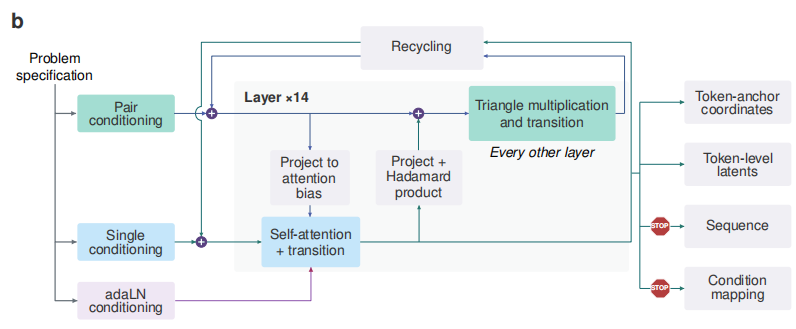
توسيع بيانات التدريب: إدخال بيانات تركيبية من محاكاة فيزيائية متعددة الوسائط، وبيانات تقطير تنبؤ هيكلي، تغطي الجزيئات الصغيرة، والأحماض النووية، وواجهات البروتينات؛ أثناء عملية التدريب، عند أخذ عينات لمعلومات الشرط، تم ضبط الميزات خصيصًا لتتناسب مع متطلبات التصميم الواقعية، وتعزيز قدرة النموذج على فهم القيود الفعالة فعليًا، مثل أخذ عينات لقيود مواضع الذرات الطرفية في جيوب تشبه مواقع النشاط الإنزيمي، واستخدام كميات كبيرة من البيانات الخاصة بالبروتينات فقط لتوليد مهام سقالات الحوافذ الذرية الواقعية؛ تعزيز تمثيل الاقتران: تنفيذ تحديث ضربي مثلثي بعد كل كتلة محول (Transformer) (كما هو موضح في الشكل أدناه)، لتعزيز تفاعل المعلومات من الميزات الفردية إلى ميزات الاقتران، وفي نفس الوقت توسيع أبعاد الطبقات المخفية؛ بالإضافة إلى الاستدلال الداخلي / الخارجي.
الاستدلال المزدوج
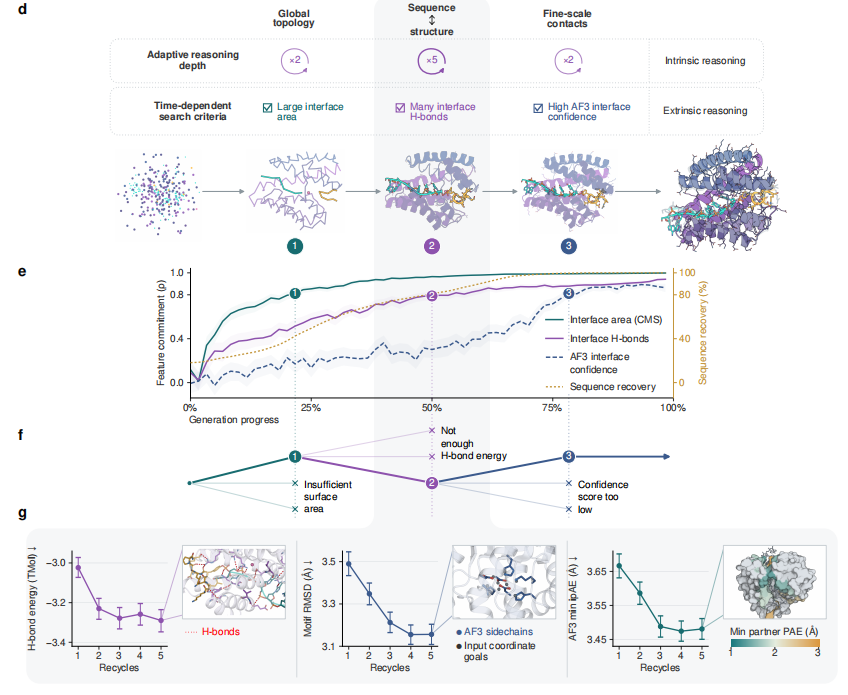
الاستدلال الداخلي (Intrinsic Reasoning): تنفيذ التحسين الدائري عند كل خطوة زمنية للانتشار (Diffusion)، بدلاً من الاعتماد عليه فقط في مرحلة المعالجة المسبقة الأولية. يمكن أن يختلف عدد تمريرات الدورة حسب الخطوة الزمنية، للسماح بتحسين أكثر دقة خلال مراحل التوليد الحاسمة.
الاستدلال الخارجي (Extrinsic Reasoning): البحث عبر المسارات بين مسارات توليد متعددة، وتحيز نتائج العينات نحو التصاميم التي تلبي المقاييس المحددة من قبل المستخدم. في الوقت نفسه، يمكن تنفيذ الاستدلال الخارجي بطريقة مرتبطة بالميزات والخطوات الزمنية، أي استهداف تحسين كل مقياس بعد أن تبدأ الميزات الجزيئية المقابلة في التشكل والاستقرار، بدلاً من تحسين جميع الأهداف دفعة واحدة طوال العملية.
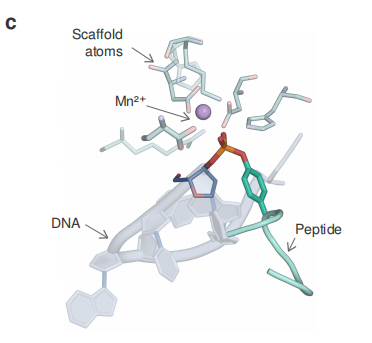
قام فريق البحث بتحليل عملية توليد النموذج باستخدام حالة اختبار: تصميم إنزيم يقطع الرابطة التساهمية بين سلسلة الببتيد والحمض النووي DNA في ركيزة مرنة. كما هو موضح في الشكل أدناه:
وجد البحث أن أهداف التصميم المختلفة تتحقق تدريجيًا في نقاط زمنية مختلفة من عملية التوليد. على وجه التحديد، من بين 500 مسار، كانت النقاط الزمنية التي وصل فيها الارتباط بين نتائج الاستنتاج المستقلة والنتائج النهائية إلى حوالي 0.8 هي:
- يمكن التنبؤ بتقدم توليد مساحة الواجهة عند حوالي 20%؛
- يمكن التنبؤ بتفاعلات الروابط الهيدروجينية عند حوالي 50%؛
- يمكن التنبؤ بموثوقية واجهة AlphaFold3 (AF3) عند حوالي 80%.
أثناء عملية البحث في وقت الاستدلال، يتم فرز المسارات بشكل تسلسلي بناءً على مساحة الواجهة، وتفاعلات الروابط الهيدروجينية، وموثوقية واجهة AF3، مع إنهاء المسارات التي تنحرف عن المعايير الحالية عند كل نقطة فحص. يمكن لهذا البحث الزمني اجتياز الفضاء الكامن بكفاءة، والعثور على مخرجات تلبي جميع المعايير (كما هو موضح في الشكل أدناه). مقارنةً بأخذ العينات البسيط، في الحالة المذكورة أعلاه، كان عدد التصاميم المؤهلة الفريدة لكل ساعة GPU ثلاثة أضعاف العدد الأصلي.
العديد من الابتكارات، ولا سيما إدخال الاستدلال المزدوج الداخلي/الخارجي، مكّن RFD4-Proteina من تجاوز اختناقين رئيسيين في نماذج توليد البروتينات التقليدية السابقة: محدودية الفضاء الكيميائي الجزيئي القابل للتغطية، ونقص القدرة على البحث الفعال عن تصاميم تلبي قيود كيميائية-هندسية مقترنة؛ راقٍ تصميم البروتينات من مجرد أخذ عينات انتشار إلى范式 تصميم جزيئات حيوية موحدة كبيرة تتضمن الاستدلال، والقيود الفيزيائية، والتحسين المشترك للتسلسل-الهيكل.
اختبارات المعايير المحاكاة والتحقق المختبري المزدوج لقدرات النموذج
التحقق في سيناريوهات جزيئية مختلفة
أولاً، أجرى فريق البحث اختبارات محاكاة حاسوبية، حيث قارنوا RFD4-Proteina مع طرق توليدية، وتهيئة (Hallucination)، وتحسين هيكلي أخرى، شملت مهام الاختبار أربع فئات رئيسية: تصميم ربطات البروتين (24 هدفًا)، تصميم ربطات الجزيئات الصغيرة (77 هدفًا)، بناء سقالات الإنزيمات (37 هدفًا)، وتصميم ربطات الحمض النووي DNA (3 أهداف). كما هو موضح في الشكل أدناه:
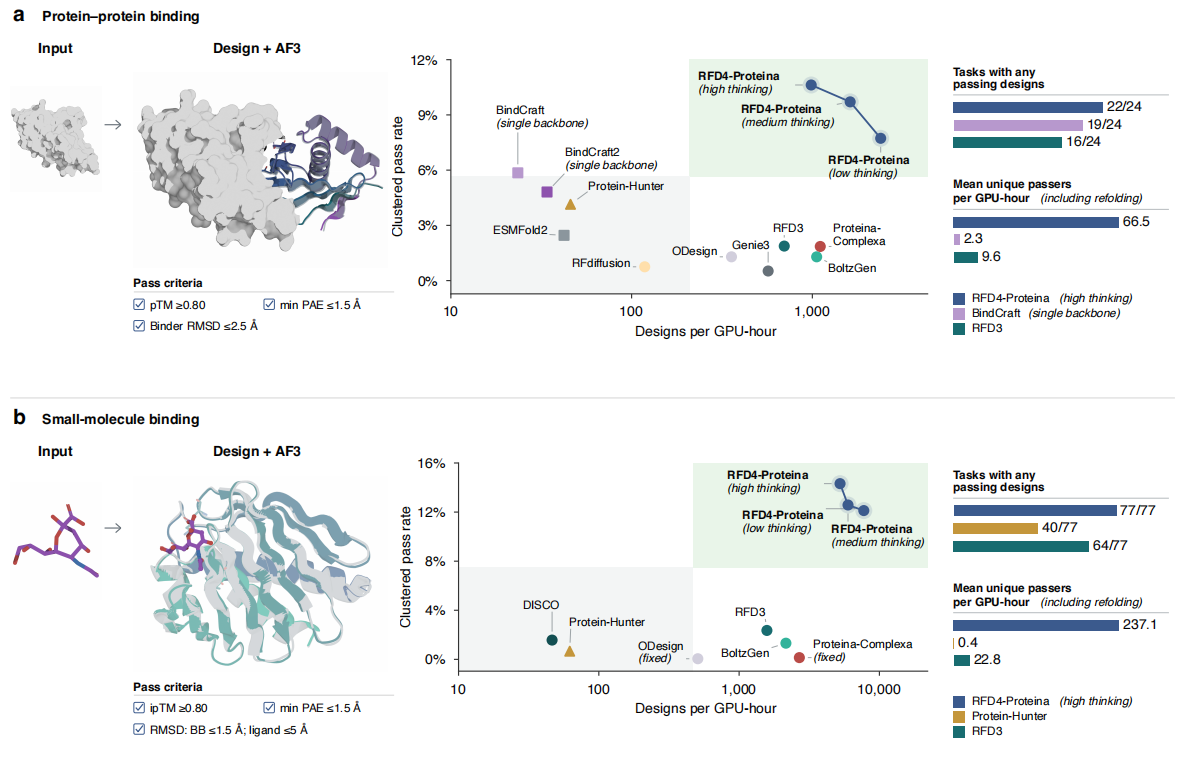
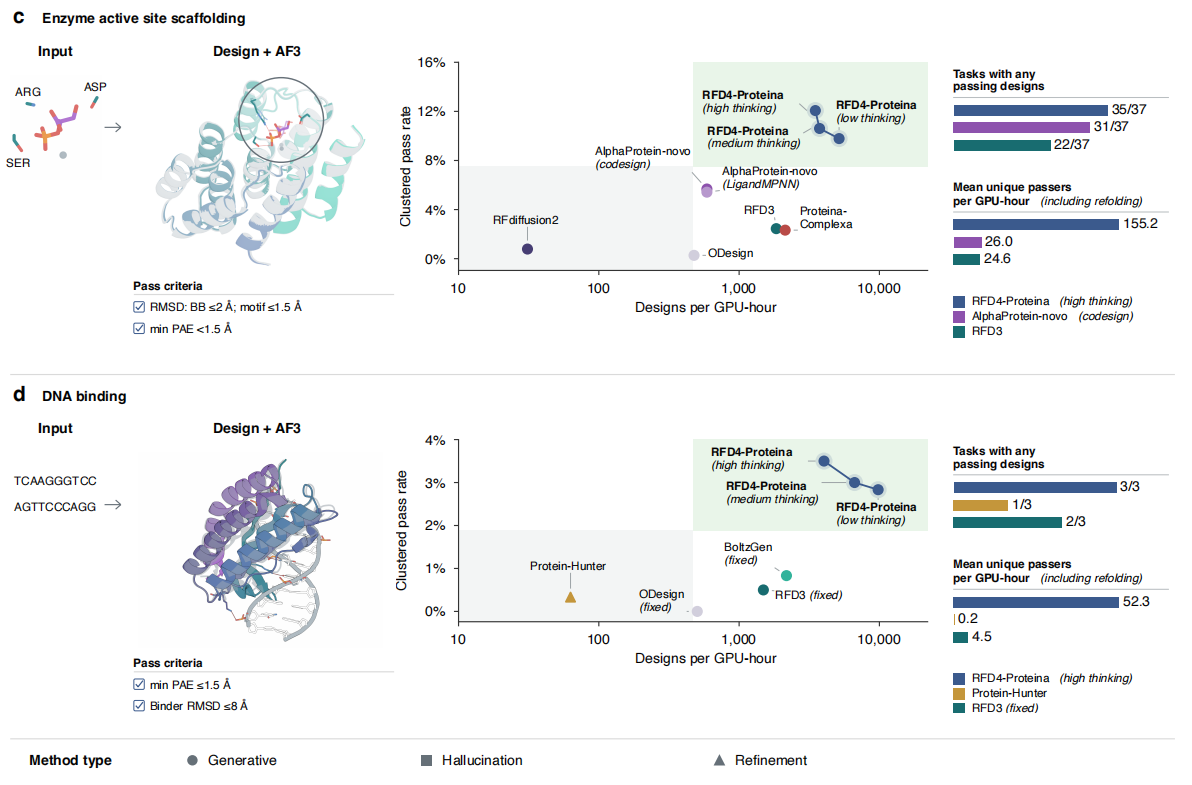
تم التقييم من خلال استخدام AF3 للتنبؤ بالهيكل بشكل مستقل بناءً على التسلسلات المصممة، وتقييم مدى تطابقه مع الهيكل المستهدف، وما إذا كان يستوفي معايير الهيكل والموثوقية الخاصة بالمهمة. المقياسان الأساسيان هما:
- الإنتاجية التوليدية (Generation Throughput): عدد التصاميم التي يمكن إنتاجها لكل ساعة GPU؛
- معدل اجتياز العناقيد (Clustered Pass Rate): نسبة الهياكل المؤهلة التي اجتازت معايير التقييم وكانت غير متكررة هيكليًا في كل محاولة أولية.
في ظل إعداد "التفكير العالي" (high-thinking)، أظهرت النتائج أنه في مهمة ربط البروتين، حققت طريقة تجميع RFD4-Proteina معدل قبول للتجميع بلغ 10.6%، وهو أداء شبه مثالي، بينما سجل نموذج BindCraft، الذي جاء في المرتبة الثانية من حيث الأداء، 5.9% فقط، مع زيادة في إنتاجية التوليد بمقدار 42 مرة. وفي مهمة بناء هياكل الإنزيمات، بلغ معدل قبول التجميع لـ RFD4-Proteina 12.1%، مقارنة بـ 5.7% لنموذج التصميم المشترك AlphaProtein-novo، مع زيادة في إنتاجية التوليد بمقدار 5.9 مرة. أما في مهمة ربط الجزيئات الصغيرة، فبلغ معدل قبول التجميع لـ RFD4-Proteina 14.3%، مقابل 2.4% لـ RFD3، مع زيادة في إنتاجية التوليد بمقدار 3.3 مرة. وقد نجحت جميع الأهداف الـ 77 في اجتياز مرحلة التصميم (مقارنة بـ 64 هدفاً لـ RFD3). وفي مهمة ربط الحمض النووي DNA، بلغ معدل قبول التجميع لـ RFD4-Proteina 3.5%، مقابل 0.8% لـ BoltzGen.
يتضح مما سبق أنه عبر الاختبارات المعيارية الأربعة، تمكنت RFD4-Proteina من حل عدد أكبر من تحديات التصميم مقارنة بجميع النماذج الأساسية (Baseline) المستخدمة للمقارنة، وذلك دون الحاجة إلى تغذية راجعة من متنبئ هيكلي أثناء عملية التوليد، مع تحقيق معدل قبول تجميع أعلى وسرعة توليد أسرع. وعند احتساب وقت تقييم AF3، فإن عدد التجميعات الصالحة التي تولدها RFD4-Proteina لكل ساعة GPU في إعداد "التفكير العالي" يتجاوز النماذج الأساسية الثانية الأفضل أداءً في مهام ربط البروتين، وربط الجزيئات الصغيرة، وبناء هياكل الإنزيمات، وربط الحمض النووي DNA، بمقدار 5 أضعاف، و10.4 أضعاف، و6 أضعاف، و5.5 أضعاف على التوالي.
عند اختبار ما إذا كان تحسين القدرة على الاستدلال الداخلي يمكن أن يعزز معدل نجاح التصميم، ارتفع معدل قبول التجميع في مهمة ربط البروتين تدريجياً من 7.7% إلى 10.6% عبر الإعدادات Low، وMedium، وhigh-thinking على التوالي. وفي مهمة ربط الجزيئات الصغيرة، ارتفع المعدل من 12.1% إلى 14.3%. وفي مهمة بناء هياكل الإنزيمات، ارتفع من 9.8% إلى 12.1%. وفي مهمة ربط الحمض النووي DNA، ارتفع من 2.8% إلى 3.5%. ومع ذلك، انخفضت إنتاجية التوليد مع زيادة الحوسبة؛ فمثلاً في مهمة ربط البروتين، انخفض عدد التصاميم لكل ساعة GPU من 2388 (في إعداد Low) إلى 986 (في إعداد high-thinking).
وعند استكشاف ما إذا كان السماح بتغير التوافق الجزيئي (Conformation) للبيئة أثناء عملية التوليد يعزز معدل نجاح التصميم، أظهرت RFD4-Proteina في ظل إعداد "التفكير العالي" أن معدل قبول التجميع ارتفع من 8.1% إلى 14.3% عند السماح بتوليد توافق الليجاند (Ligand) بالتزامن مع البروتين المصمم. وعند السماح بتغير توافق السلاسل الجانبية للهدف وتوافق الحمض النووي DNA، ارتفع معدل قبول التجميع لربط البروتين من 9.6% إلى 10.6%، ولربط الحمض النووي DNA من 2.0% إلى 3.5%.
عند دراسة ما إذا كان الاستدلال الخارجي يمكن أن يعزز معدل نجاح التصميم من خلال دمج بيانات من أدوات أخرى، وجد أن البحث يمكنه تجنب إهدار الموارد الحاسوبية على مسارات غير واعدة عبر الاستعانة بأدوات خارجية. وقد تحسن كفاءة توليد تصاميم فريدة مؤهلة بمقدار 22.6% في مهمة بناء هياكل الإنزيمات، وبنسبة 24.6% في مهمة ربط الجزيئات الصغيرة، وهي مهام ذات صعوبة عالية.
أخيراً، أكدت تجارب الإزالة (Ablation) واحدة تلو الأخرى أن تحديث المثلثات (Triangular updates)، وعملية الضرب الهاداماردي (Hadamard product)، وآلية الاستدلال الداخلي، والتدريب الاستكشافي، هي جميعها مكونات حاسمة لتحسين أداء النموذج. وكان لتحديث الضرب المثلثي المساهمة الأكبر في الأداء، بينما قدم المكونات الأخرى مكاسب بدرجات متفاوتة، مما يدل على أن التحسين الشامل لا يعتمد على تقنية واحدة منفردة.
التحقق ضمن سير عمل جزيئي محدد
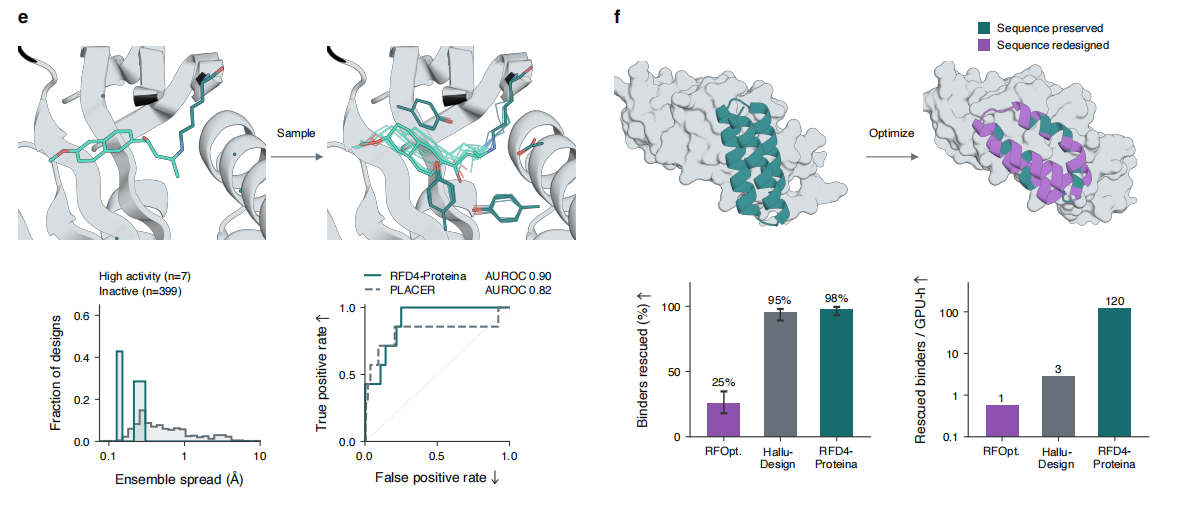
بعد التحقق من توليد التصاميم الجديدة، قيّم الباحثون ما إذا كان النموذج نفسه يدعم بناء وتقييم وتحسين سير العمل الجزيئي المطلوب للتصميم. اختبرت التجارب ست حالات استخدام، تشمل تعيين التسلسل، وجمع التوافقات، وتحسين الهياكل الحالية، كما هو موضح في الشكل التالي:
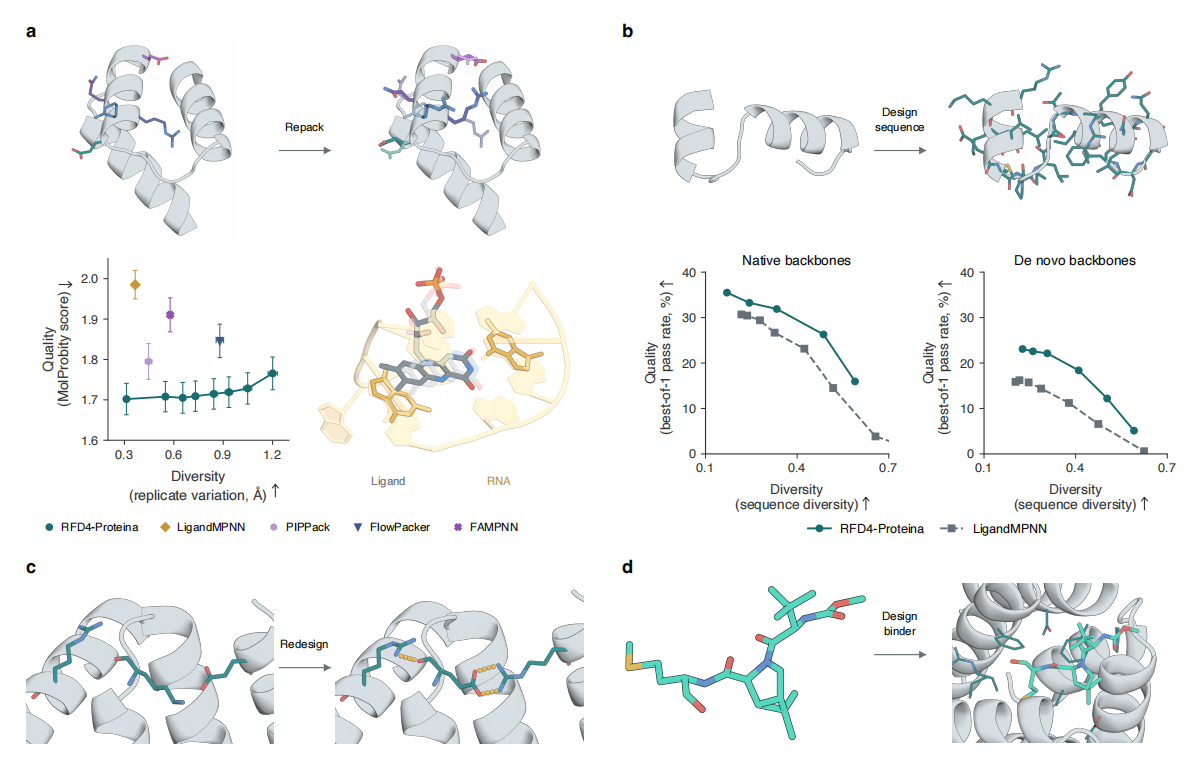
في مهمة تعبئة السلاسل الجانبية (Side-chain packing)، وعند إعطاء تسلسل البروتين وإحداثيات الهيكل الرئيسي، حققت RFD4-Proteina متوسط درجة MolProbity أقل من LigandMPNN عند تنوع توافقي مماثل، حيث بلغت 1.70 مقابل 1.99.
MolProbity: أداة لفحص جودة هيكل البروتين، تستخدم للتحقق من أطوال الروابط، وزوايا الروابط، والتعارضات الفراغية، والالتواءات غير المعقولة، وهي المؤشر الأكثر استخداماً في مهام تعبئة السلاسل الجانبية. كلما انخفضت درجة MolProbity، دل ذلك على جودة أفضل للستريو-كيمياء (Stereochemistry) الهيكل.
يمكن لزيادة ضوضاء العينة (Sampling noise) رفع متوسط الاختلاف بين السلاسل الجانبية من 0.31 أنغستروم إلى 1.20 أنغستروم، مما يشير إلى إمكانية توليد توافقات متنوعة دون التأثير على جودة الهيكل، حيث ارتفعت درجة MolProbity فقط بشكل طفيف من 1.70 إلى 1.77.
في مهمة تصميم التسلسل مع تثبيت الهيكل، تم تقييم RFD4-Proteina كأداة للطي العكسي (Inverse folding). أظهرت النتائج، باستخدام مجموعتين اختباريتين إحداهما بهياكل بروتينات طبيعية والأخرى بهياكل مصممة من الصفر بواسطة RFD3، أن RFD4-Proteina حافظت على معدل قبول أعلى بشكل ثابت مقارنة بـ LigandMPNN حتى عند تنوع المطابقة.
في مهمة تصميم تسلسلات الهيكل المرن، وعلى مجموعات اختبار الأهداف/الأهداف خارج المستهدف لـ 13 مجموعة من HBDesigner، بلغ متوسط الفرق في خصوصية ipTM (ΔipTM) لـ RFD4-Proteina بالهيكل المرن 0.25، بينما كان 0.18 فقط لـ RFD4-Proteina بالهيكل الثابت، وهو أعلى قيمة بين جميع طرق المقارنة.
يُعرّف ΔipTM بأنه الفرق في قيمة ipTM بين الهدف والهدف خارج المستهدف؛ تشير القيم الأعلى إلى خصوصية أقوى للهدف المستهدف مقارنةً بالبروتينات خارج المستهدف.
في مهمة الكيمياء الفراغية للربيطات، بلغت دقة التماثل الضوئي (chirality) لـ RFD4-Proteina نسبة 98.8%؛ وبلغت دقة الكيمياء الفراغية للروابط المزدوجة (double-bond stereochemistry) نسبة 92.2%؛ وسجلت درجة PoseBusters (السلامة الكيميائية الشاملة) 92.3%، متفوقةً في جميع الحالات على AF3 وعلى النموذج التوليدي صاحب المركز الثاني.
في مهمة تحسين التصميم، أظهرت الدراسة الاستقصائية حول إمكانية إنقاذ التصاميم المولدة التي لم تجتز الاختبارات التجريبية، أنه بعد إجراء 6 عمليات تحسين لكل محاولة تصميم، نجح RFD4-Proteina في إصلاح 100 تصميم من أصل 102، بينما أصلح HalluDesign 97 تصميمًا فقط، وأصلح RFoptimization 26 تصميمًا فقط. وتجدر الإشارة أيضًا إلى أن الوقت المستغرق بواسطة RFD4-Proteina كان قصيرًا جدًا، وأقصر من أي نموذج آخر.
التحقق التجريبي المختبري
اختبر فريق البحث أداء RFD4-Proteina في مهام تصميم متعددة تكون فيها الخصوصية قيدًا أساسيًا.
أولاً، استهدفوا الكالمودولين (كما هو موضح أدناه)، الذي يوجد في حالتين: الحالة الخالية من الكالسيوم (تكوين واحد) وحالة الارتباط بأيونات Ca²⁺ (تتحول إلى تكوين مختلف تمامًا). كان هدف فريق البحث هو التعرف فقط على الكالمودولين في الحالة الأخيرة. من بين 18 تسلسلًا مصممًا تم اختباره، أظهرت 12 منها ارتباطًا معتمدًا على أيونات الكالسيوم، حيث تراوحت ألفة الارتباط الظاهرية المقاسة بين 69 بيكولتر و37 نانومولار.
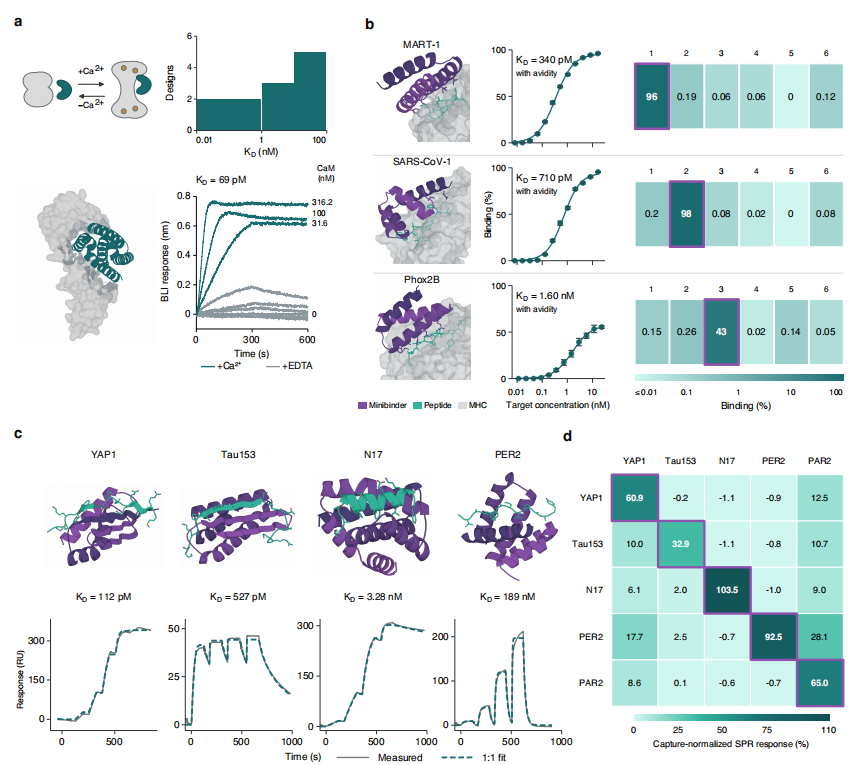
في مهمة pMHC، قيّم فريق البحث قدرة RFD4-Proteina على الارتباط الدقيق بالببتيدات المستهدفة، حيث صمموا بروتينات رابطات لببتيدات MART-1، وببتيد غشاء فيروس SARS-CoV-1، وببتيد Phox2B. أظهرت تجارب المعايرة باستخدام عرض الخميرة أن تركيزات الارتباط النصفي الظاهرية (Kd) للبروتينات الرابطات الموجهة ضد الببتيدات الثلاثة كانت 340 بيكولتر، و710 بيكولتر، و1.60 نانومولار على التوالي. وعند استخدام ببتيدات خارج المستهدف ذات تسلسلات متشابهة جدًا في فحوصات الاختيار، تم تحقيق فرق في الخصوصية يتجاوز 100 ضعف في جميع الحالات.
والجدير بالذكر أن بعض الببتيدات المستهدفة كانت متشابهة جدًا مع الببتيدات غير المستهدفة؛ فببتيد خارج المستهدف لـ Phox2B يختلف عن الببتيد المستهدف بحمض أميني واحد فقط، ويختلف ببتيد SARS بحمضين أميينين فقط، مما يوضح قدرة RFD4-Proteina على تصميم رابطات pMHC مصغرة عالية الخصوصية.
في مهمة IDR (المناطق الداخلية غير المنظمة)، اختبر فريق البحث ما إذا كانت قدرة الاستدلال التكويني لـ RFD4-Proteina تتيح تصميم رابطات ضد 8 أنواع من ببتيدات IDR. أظهرت النتائج فشلًا واحدًا في كل فئة من فئتي ببتيدات IDR، بينما تم الحصول على رابطات عالية الألفة للستة الباقية. ومن بين هذه الرابطات، كانت أولى البروتينات الرابطات المصممة من الصفر (de novo) وتستهدف مناطق IDR في YAP1 وTau، وقد بلغت أقوى ألفة ارتباط لها 112 بيكولتر و527 بيكولتر على التوالي.
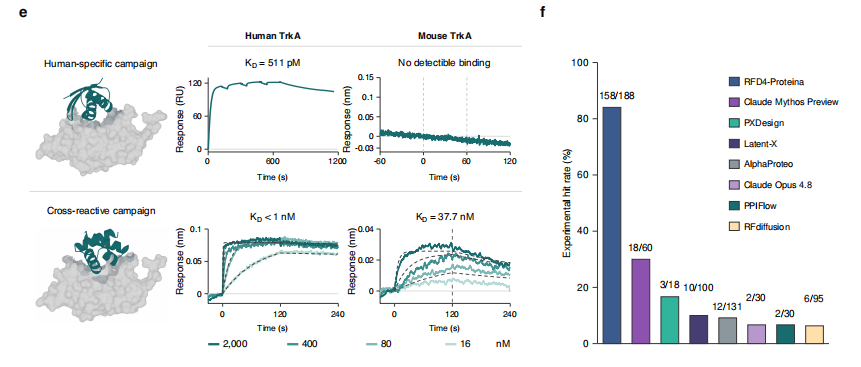
في مهمة تصميم بروتينات الكيناز، حدد فريق البحث مهمتين: الأولى هي الارتباط فقط بـ TrkA البشري، وعدم الارتباط بـ TrkA الفأري، وعدم الارتباط بـ TrkB أو TrkC البشريين؛ والثانية هي الارتباط بـ TrkA البشري وTrkA الفأري في آنٍ واحد، مع استمرار عدم الارتباط بـ TrkB وTrkC. في تجارب التفاعل المتصالب عبر الأنواع، استوفى 18 تصميمًا من أصل 94 النمط المتوقع؛ وكانت أفضل ألفة ارتباط لـ TrkA البشري أقل من 1 نانومولار، ولـ TrkA الفأري 37.7 نانومولار.
في غياب قيود خاصة، حيث طُلب فقط الارتباط بـ TrkA البشري، حققت 158 تصميمًا من أصل 188 تصميمًا بواسطة RFD4-Proteina ألفة ارتباط أقل من 1 ميكرومولار، بنسبة نجاح بلغت 84%. وبالمقارنة، سجل Claude Mythos Preview (الذي يستخدم أدوات تصميم البروتين مفتوحة المصدر) فقط 18 من 60، بنسبة نجاح 30% فقط.
اختبر الباحثون بعد ذلك قدرة RFD4-Proteina على التعامل مع الأنظمة الجزيئية المعقدة التي تحمل تعديلات بعد الترجمة: الجلكزة والفوسفرة.
في مهمة الجلكزة، كانت القيود السابقة تكمن في القدرة على تثبيت واستقرار سلاسل السكريات قصيرة عالية المانوز فقط (مثل Man5 إلى Man8)، والعجز عن تثبيت أطول السلاسل مثل Man9 أو GlcMan9. كان الهدف هذه المرة هو تصميم بروتينات أصغر باستخدام RFD4-Proteina، مع الحفاظ بشكل أساسي على Man9/GlcMan9، مع ضمان بقاء المانوز الطرفي متاحًا للاتصال.
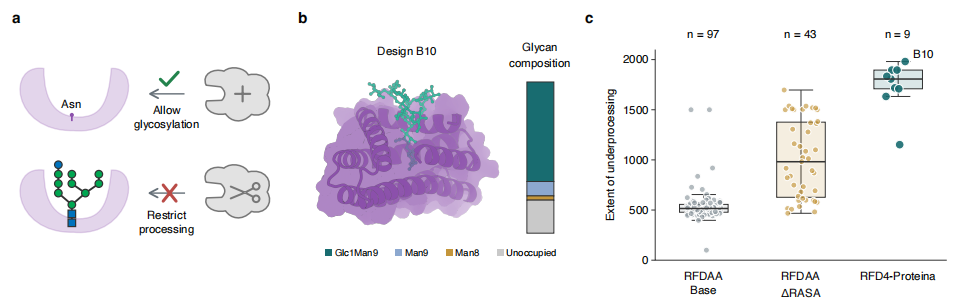
أظهرت النتائج أن RFD4-Proteina حقق تحسنًا كبيرًا في معدل نجاح التصميم الحسابي مقارنةً بـ RFDAA التقليدية. في تحليلات مطياف الكتلة LC-MS/MS، احتفظ 8 من أصل 9 تصميمات بسلاسل سكرية عالية المانوز (غير مقصوصة) في مواقع التعديل بنسبة تتجاوز 90%، مسجلاً معدل نجاح أعلى لغير المقصوص من أي طريقة سابقة.
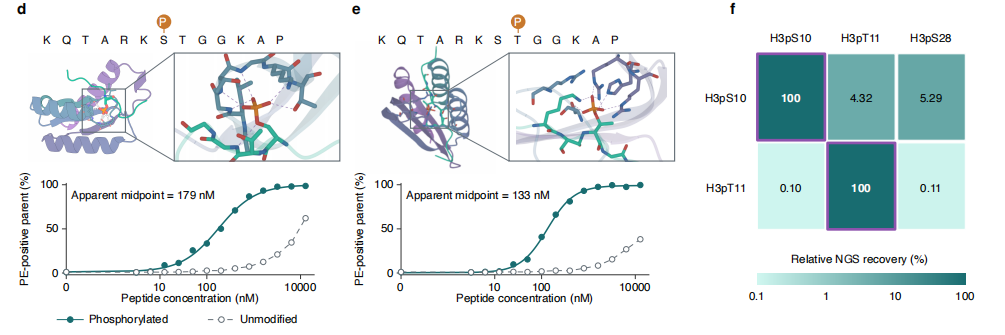
في مهام الفسفرة، تحدت مجموعة البحث موقعين متجاورين على ذيل الهستون H3 وهما pS10 وpT11، للحصول على بروتينات ربط تعتمد على الفسفرة لكل منهما على حدة. أظهرت النتائج أن التسلسلات الناجحة تفضل الارتباط بأهدافها المفسفرة، وتحافظ على انتقائية تجاه فسفرة المواقع المجاورة غير المستهدفة، مما يبرز قدرة RFD4-Proteina على التعرف على الفروق الدقيقة في البيئة الكيميائية الموضعية، وليس مجرد التعرف على مجموعة الفوسفات، بل أيضاً على الحمض الأميني الذي تحمل عليه هذه المجموعة والسياق التسلسلي المحيط بها، مما يحقق تمييزاً دقيقاً على مستوى الموقع.
يُعد تصميم الإنزيمات مجالاً بحثياً واعداً للغاية، إذ يتيح تطوير محفزات حيوية فعالة وصديقة للبيئة وعالية الانتقائية لمجموعة واسعة من التفاعلات الكيميائية. اختارت مجموعة البحث نوعين من المهام الإنزيمية عالية الصعوبة للتحقق من قدرة RFD4-Proteina على بناء المراكز النشطة، وهما الإنزيمات ثنائية المعدن وليغازات السيستئين.
أولاً، تم اختبار قدرة RFD4-Proteina على تصميم إنزيم فوسفوتريستراز قادر على تحلل باراثيون. في السابق، استخدم الفريق RFD3 لبناء 6 بقايا تحفيزية حول عاملين مرافقين معدنيين ومركب الباراثيون، مما أدى إلى كفاءة تحفيزية منخفضة نسبياً، بلغت أقصاها 4±3 M⁻¹s⁻¹. في هذه التجربة، افترضنا أن إضافة بقايا تحفيزية أخرى ستعزز الكفاءة التحفيزية.
أظهرت النتائج أنه في هذا الإنزيم المحاكي المحتوي على ثماني بقايا، نجح 15 تصميماً من أصل 1000 تصميم بواسطة RFD4-Proteina (1.5%) في اجتياز معايير RMSD للزخارف الشائعة ومعايير ثقة الركيزة؛ بينما لم ينجح أي تصميم من أصل 1000 تصميم بواسطة RFD3.
يشير انخفاض قيمة RMSD إلى تقارب أكبر بين الموقع النشط المصمم والتكوين المثالي للإنزيم النظري (theozyme).
في الفحوصات اللاحقة، تبين أن 89 تصميماً من أصل 288 تصميماً بواسطة RFD4-Proteina أظهرت نشاطاً، موزعة على 25 عائلة من أصل 47 عائلة هيكلية؛ بينما لم يُظهر أي من التصاميم الـ192 بواسطة RFD3 أي نشاط.
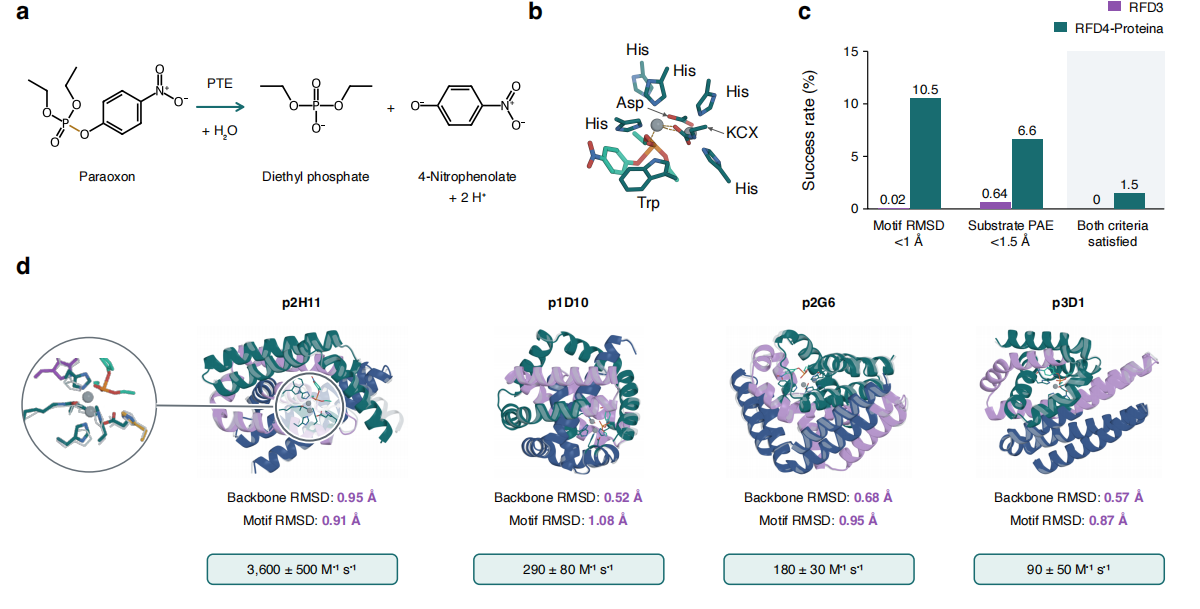
بعد ذلك، قام الفريق بتوصيف 6 تصاميم من 4 عائلات هيكلية، حيث بلغت الكفاءة التحفيزية لأفضل تصميمين kcat / KM = 3600 ± 500 M⁻¹s⁻¹ و kcat = 0.9 s⁻¹ على التوالي، مما يمثل زيادة بمقدار 1.5 × 10⁷ مرة في معدل التحلل غير المحفز؛ وكانت الكفاءة التحفيزية لجميع التصاميم الستة المؤكدة أعلى بـ 10 إلى 1000 مرة من إنزيم الفوسفوتريستراز المحاكي السابق المكون من ست بقايا.
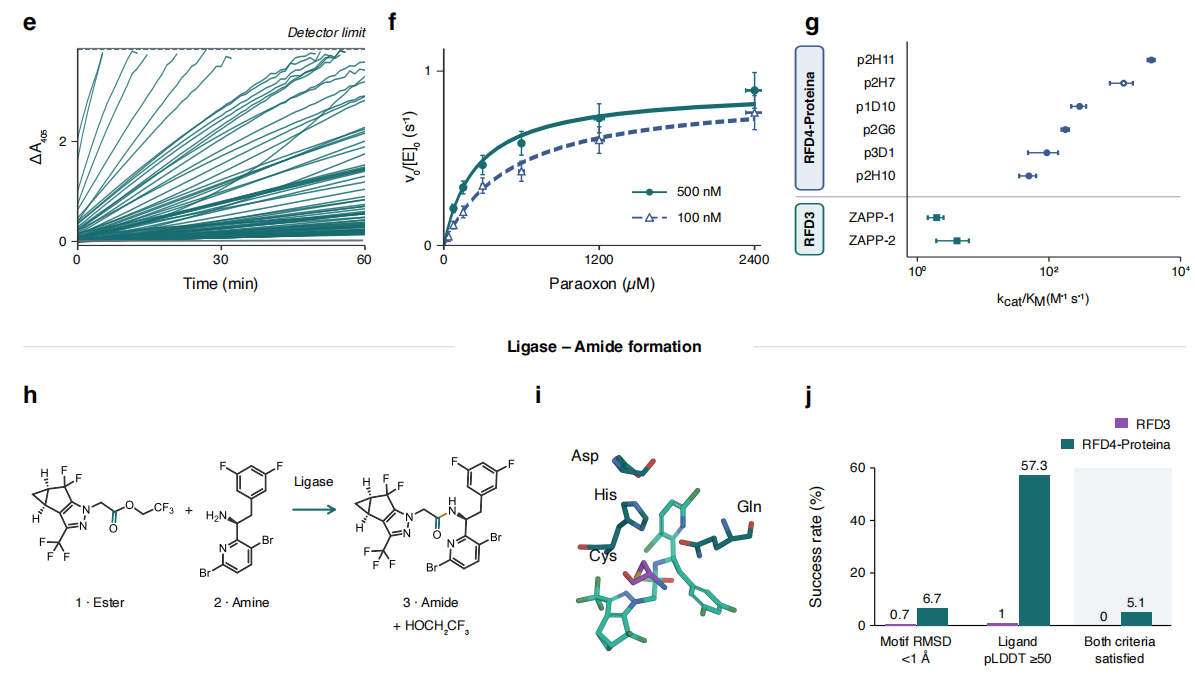
واصلت مجموعة البحث استكشاف قدرة RFD4-Proteina على تصميم إنزيمات تكوين روابط للاستخدام في الأدوية الحيوية. كانت التفاعل المستهدف المختبر هو خطوة في مسار تصنيع Lenacapavir، والتي تنطوي على ربط إستر منشط مع أمين كيرالي ذو عوائق فراغية كبيرة لتكوين رابطة أميدية.
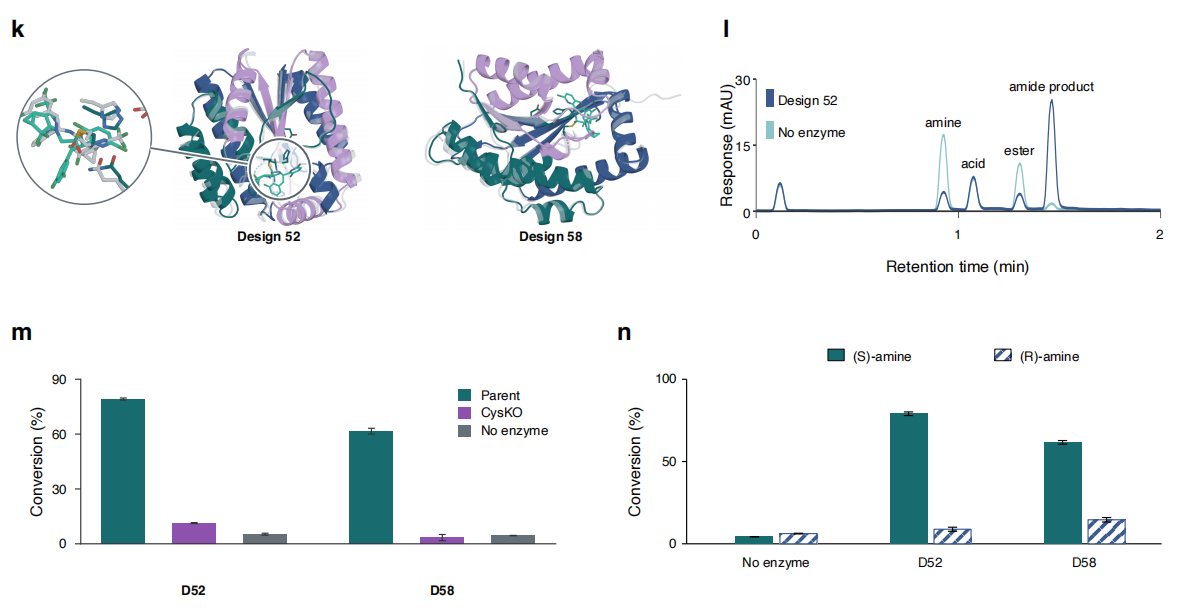
أظهرت نتائج الفحص الحسابي أن معدل النجاح الحسابي لـ RFD4-Proteina أعلى بعدة مراتب عددية مقارنة بـ RFD3؛ وتم اختيار جينات 67 تسلسلاً مصمماً للاختبار التجريبي، حيث نجح 4 من هذه التصاميم في تكوين الرابطة الأميدية، مع محتوى أعلى من الناتج المستهدف من الأمين S مقارنة بالخلفية؛ بينما لم يحقق أي من التصاميم الـ72 المصممة سابقاً بواسطة RFD3 نتائج فعالة.
كان التصميمان الأفضل هما رقم 52 ورقم 58، حيث حولا 79% و61% من الأمين بمتصاوغ S إلى أميد على التوالي؛ بينما كانت نسبة التحويل للأمين بمتصاوغ R فقط 8.8% و14.6%؛ وكانت نسب التحويل في مجموعة التحكم الخالية من الإنزيم 4.3% و6.2% على التوالي.
كلمة ختامية
بشكل عام، يدمج RFD4-Proteina بشكل عميق بين النمذجة الفيزيائية والتعلم العميق، معتمداً ليس فقط على التوزيعات الإحصائية للبروتينات الطبيعية في قاعدة بيانات PDB، بل أيضاً على إدخال مجموعات بيانات اصطناعية محاكاة فيزيائياً، بالإضافة إلى استخدام حقل قوة Rosetta القابل للاشتقاق للإشراف والتوجيه أثناء عملية التوليد. يكسر هذا النهج حالة العمل المنفصل للأدوات المتخصصة المتعددة التي كانت سائدة سابقاً، ويعتمد على نموذج الاستدلال في الفضاء الكامن، مما يحول تصميم البروتينات من أخذ عينات وتوليد عشوائي إلى نمط بحث مقيد يتضمن التقييم والتحسين التكراري، مما يحقق زيادة كبيرة في معدلات نجاح تصميم الجزيئات المعقدة وكفاءة الحساب في الاختبارات المرجعية الحاسوبية.
بالطبع، النموذج ليس مثالياً تماماً، إذ غالباً ما تتطلب معاملات جدولة الاستدلال تجارب أولية صغيرة النطاق للاستكشاف والتحسين، كما أن المهام المعقدة تفرض بعض النفقات الحسابية. لكن الشيفرة المصدرية والأوزان المفتوحة توفر نقطة انطلاق جديدة للمجال بأكمله، مشيرةً إلى أن الدمج القوي بين التوليد بالذكاء الاصطناعي وقواعد الفيزياء الحيوية يمكن أن يوسع حدود تصميم البروتينات، ويساعد الباحثين على تحويل الجزيئات المصممة حاسوبياً بشكل أسرع إلى بروتينات ربط ذات وظائف حقيقية وإنزيمات جديدة اصطناعية في التجارب المخبرية الرطبة، مما يفتح آفاقاً جديدة لتطوير الأدوية والبيولوجيا التركيبية.